(Carolus Linnaeus en latín; Linneo en castellano; Rashult, Suecia, 1707 - Uppsala, id., 1778) Botánico sueco. Su temprano interés por las plantas hizo que a la edad de ocho años se le conociera ya por el apodo del Pequeño Botánico, si bien compaginó esta vocación con los estudios de medicina, que cursó en las universidades de Lundt y Uppsala, y con su establecimiento, en 1738, en esta última ciudad como médico privado y como profesor de medicina en su universidad (1741). Además de realizar expediciones botánicas a Laponia, por cuenta de la Academia de Ciencias de Uppsala, amplió sus estudios de medicina en los Países Bajos, y recorrió otros países europeos, como Gran Bretaña y Francia. Fue catedrático de botánica en la Universidad de Uppsala (1742).
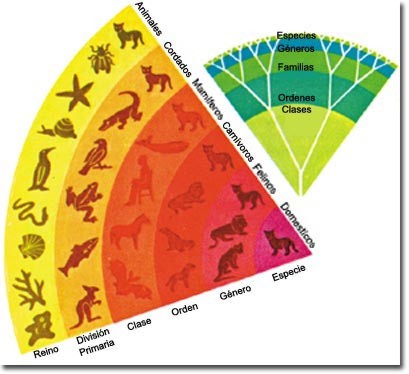
Considerado el creador de la clasificación de los seres vivos o taxonomía, desarrolló un sistema de nomenclatura binomial (1731) que se convertiría en clásico, basado en la utilización de un primer término, escrito en letras mayúsculas, indicativa del género y una segunda parte, correspondiente al nombre específico de la especie descrita, escrita en letra minúscula. Por otro lado, agrupó los géneros en familias, las familias en clases, las clases en tipos (fila) y los tipos en reinos.
Con anterioridad a sus trabajos habían existido ya intentos de introducir cierto orden en la aparente confusión que supone la ingente proliferación de seres vivos. El primero que trató de establecer una clasificación fue J.-P. de Tournefort (1656-1708) mediante la introducción de un sistema clasificatorio natural basado en la «realidad objetiva de las especies, los géneros y las clases». Casi simultáneamente John Ray redactó una obra monumental, Historia plantarum generalis (1686-1704), en la que intentó distribuir de una manera racional las plantas y definir con precisión, básicamente, la noción de especie a través del establecimiento de sus relaciones con una comunidad de origen.
Bienvenidos al blog de ciencia para pasar el rato, siempre será mejor que ver la tele.
sábado, 17 de febrero de 2018
viernes, 16 de febrero de 2018
Sistema binomial
El botánico sueco Carlos Linneo reveló los problemas en el arreglo sistemático de la botánica y esbozó su propio método de clasificación, en el cual las especies eran entidades reales que podrían agruparse en categorías superiores llamadas género. Parte de la innovación de Linneo fue agrupar los géneros en taxa superiores que se basaban en similitudes compartidas: los géneros en órdenes, los órdenes en clases, y las clases en reinos. Simplificó la nomenclatura científica al dar un nombre latino para designar al género y uno para la especie, la nomenclatura binomial.
Los primeros nombres que tuvieron las plantas y animales eran nombres comunes, pero estos tienen los siguientes inconvenientes:
· No son universales, sólo son aplicables a una lengua
· Sólo algunas plantas o animales tienen nombre vernáculo.
· A menudo, dos o más organismos no relacionados tienen el mismo nombre común o un mismo organismo tiene diferentes nombres comunes.
· Se aplican indistintamente a géneros, especies o variedades.
Los primeros nombres que tuvieron las plantas y animales eran nombres comunes, pero estos tienen los siguientes inconvenientes:
· No son universales, sólo son aplicables a una lengua
· Sólo algunas plantas o animales tienen nombre vernáculo.
· A menudo, dos o más organismos no relacionados tienen el mismo nombre común o un mismo organismo tiene diferentes nombres comunes.
· Se aplican indistintamente a géneros, especies o variedades.
Las normas básicas para la escritura de los nombres científicos son:
· Se usa el latín o palabras latinizadas.
· La primera letra del género va en mayúscula; el resto del nombre (la especie) va en minúscula.
· Cuando se imprime, el nombre científico se escribe con letra cursiva (o itálica). Cuando se escribe a mano o a máquina, se subraya.
· Al final del nombre científico se acompaña el apellido abreviado del autor que lo describió. Lam es abreviación de Lamarck y L de Linneo. Así, por ejemplo, el encino es Quercus rotundifolia Lam, el pino piñonero es Pinus pinea L.martes, 13 de febrero de 2018
Biodiversidad y Taxonomía
Biodiversidad: La expresión “biodiversidad” o “diversidad biológica”, describe la cantidad y variedad de organismos vivos que hay en el planeta. Se define en términos de genes, especies y ecosistemas, que son el resultado de la evolución biológica. La especie humana depende de la biodiversidad para su supervivencia, por lo que puede considerarse a esta expresión como sinónimo de “vida sobre la Tierra”.
TAXONOMÍA: La Taxonomía identifica y asigna nombres científicos a los organismos basada en las relaciones evolutivas naturales. Un buen sistema de clasificación permite a los biólogos saber muchas cosas acerca de un organismo si conoce las características del grupo al que pertenecen.
La clasificación es la asignación de organismos a grupos dentro de un sistema o jerarquía de categorías distinguidos por su estructura, orígenes y otros rasgos. Existen varios tipos de clasificación:
· Sistema artificial. Estrictamente utilitario basado en el hábito, color, forma u otros caracteres de un tipo similar.
· Sistema natural. Basado en formas de parentesco.
· Sistema filogenético. Cimentado en la historia del parentesco racial y en la descendencia evolutiva común.
SISTEMA BINOMIAL DE LINNEO: El botánico sueco Carlos Linneo reveló los problemas en el arreglo sistemático de la botánica y esbozó su propio método de clasificación, en el cual las especies eran entidades reales que podrían agruparse en categorías superiores llamadas género. Parte de la innovación de Linneo fue agrupar los géneros en taxa superiores que se basaban en similitudes compartidas: los géneros en órdenes, los órdenes en clases, y las clases en reinos. Simplificó la nomenclatura científica al dar un nombre latino para designar al género y uno para la especie, la nomenclatura binomial. lunes, 12 de febrero de 2018
El colmo de la escuela es no aprender
En esta edición de “EC=Pablo Boullosa”, el conductor y titular del programa nos cuenta cómo la escuela a pesar de ser la institución que debería liderar la enseñanza, carece ella misma de un auto aprendizaje.
Tomas Morgan
En 1909, Thomas H. Morgan (1866-1945), un biólogo norteamericano que había visitado el laboratorio del botánico Hugo De Vries (1848-1935) en Holanda y había quedado impresionado por su trabajo, abandonó sus investigaciones en embriología y comenzó otras nuevas en genética. La riqueza de datos que surgió de estos estudios fue tan impresionante, que este período de la investigación genética, que duró hasta la Segunda Guerra Mundial, ha sido caracterizado como ''la edad de oro de la genética" (aunque algunos dirían que la edad de oro es la actual).
Con una notable combinación de intuición y suerte, Morgan eligió a la mosquita de la fruta, Drosophila melanogaster, como su organismo experimental. Finalmente, la mosquita de la fruta demostró ser un "material ideal" para una gran variedad de investigaciones genéticas. En las décadas siguientes, las especies de Drosophila se hicieron famosas como la principal herramienta de los biólogos para los estudios de genética animal. En la actualidad, también constituyen uno de los organismos más utilizados en los estudios de genética del desarrollo.
Tal vez el más importante de los principios establecidos por Morgan y sus colegas fue que los factores de Mendel, los genes, están ubicados en los cromosomas.
Un fuerte apoyo a la hipótesis de que los genes están en los cromosomas, provino de los estudios hechos por el genetista Morgan y su grupo en la mosquita de la fruta D. melanogaster. Dado que es fácil de criar y mantener, la Drosophila ha sido usada en una variedad de estudios genéticos. Esta mosca tiene 4 pares de cromosomas; 3 pares –los autosomas– son estructuralmente iguales en ambos sexos, pero el cuarto par, los cromosomas sexuales, es diferente. En la mosquita de la fruta, como en muchas otras especies (incluidos los humanos), los dos cromosomas sexuales son XX en las hembras y XY en los machos.
En el momento de la meiosis, los cromosomas sexuales, al igual que los autosomas, segregan. Cada óvulo recibe un cromosoma X, pero la mitad de los espermatozoides recibe un cromosoma X y la otra mitad, un cromosoma Y. Así, en Drosophila, en los humanos y en muchos otros organismos (aunque no en todos), es el gameto paterno el que determina el sexo de la progenie.
En los primeros años del siglo XX, los experimentos de cruzamientos de Drosophila mostraron que ciertas características están ligadas al sexo, o sea, que sus genes se encuentran en los cromosomas sexuales. Los genes ligados al X dan lugar a un patrón de herencia particular. En los machos, como no hay otro alelo presente, la existencia de un alelo recesivo en el cromosoma X es suficiente para que la característica se exprese en el fenotipo. Por oposición, una hembra heterocigota para una variante recesiva ligada al X portará esa variante, pero ésta no se manifestará en su fenotipo.
Con una notable combinación de intuición y suerte, Morgan eligió a la mosquita de la fruta, Drosophila melanogaster, como su organismo experimental. Finalmente, la mosquita de la fruta demostró ser un "material ideal" para una gran variedad de investigaciones genéticas. En las décadas siguientes, las especies de Drosophila se hicieron famosas como la principal herramienta de los biólogos para los estudios de genética animal. En la actualidad, también constituyen uno de los organismos más utilizados en los estudios de genética del desarrollo.
Tal vez el más importante de los principios establecidos por Morgan y sus colegas fue que los factores de Mendel, los genes, están ubicados en los cromosomas.
Un fuerte apoyo a la hipótesis de que los genes están en los cromosomas, provino de los estudios hechos por el genetista Morgan y su grupo en la mosquita de la fruta D. melanogaster. Dado que es fácil de criar y mantener, la Drosophila ha sido usada en una variedad de estudios genéticos. Esta mosca tiene 4 pares de cromosomas; 3 pares –los autosomas– son estructuralmente iguales en ambos sexos, pero el cuarto par, los cromosomas sexuales, es diferente. En la mosquita de la fruta, como en muchas otras especies (incluidos los humanos), los dos cromosomas sexuales son XX en las hembras y XY en los machos.
En los primeros años del siglo XX, los experimentos de cruzamientos de Drosophila mostraron que ciertas características están ligadas al sexo, o sea, que sus genes se encuentran en los cromosomas sexuales. Los genes ligados al X dan lugar a un patrón de herencia particular. En los machos, como no hay otro alelo presente, la existencia de un alelo recesivo en el cromosoma X es suficiente para que la característica se exprese en el fenotipo. Por oposición, una hembra heterocigota para una variante recesiva ligada al X portará esa variante, pero ésta no se manifestará en su fenotipo.
¿Que es un cladograma?
Un cladograma es un diagrama que permite representar el parentesco evolutivo entre las especies. Este se parece a un árbol genealógico en que la base del árbol representa un antepasado común para los organismos o grupos ubicados al final de las ramas. Cuando hay una ramificación en un linaje esta se representa con una nueva rama. Todos los descendientes de esta nueva rama comparten un mismo ancestro y están más cercanos entre si que con los descendientes de otras ramas. Cada cladograma por representar las relaciones evolutivas entre un grupo de seres vivos se considera una teoría científica.
Actividad:
Descarga y lee el artículo "Ilustrando el parentesco evolutivo"
Para poder realizar un cladograma
domingo, 11 de febrero de 2018
Neutralismo y equilibrio puntuado
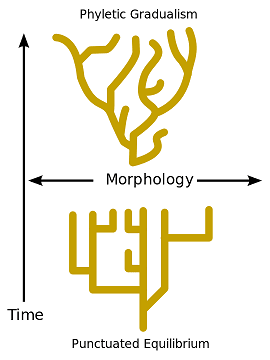
Cuando se estudia el registro fósil, los paleóntologos ponían en duda elgradualismo que afirma la teoría sintética de la evolución. Si el gradualismo fuera cierto, debería haber multitud de fósiles con características intermedias entre una especie y otra, mostrando un cambio lento y continuo en la evolución. Pero en muchos casos, desaparece de repente una especie y aparece otra.
Según algunos paleontólogos, como Stephen Jay Gould, creen que es más acertada la teoría del equilibrio puntuado o intermitente (1972). Según esta teoría, las especies están mucho tiempo sin ningún cambio o con cambios poco importantes (periodos de tiempo llamados estasis), pero en determinados momentos, algunas especies tienen periodos de cambio muy rápido.
No hay que confundir el puntualismo con el saltacionismo. El saltacionismopostula que aparecen nuevas especies en una sola generación, y el puntualismo no está a favor de eso.
El puntualismo no niega el neodarwinismo, sino que propone una explicación para los casos en los que se produce una rápida diversificación de especies.
Por ejemplo, en el Cámbrico hubo una gran diversificación de especies que no se podría explicar con el gradualismo del neodarwinismo.
Teoría neutralista o neutralismo.
El biólogo japonés Motoo Kimura, en 1968 propuso la teoría neutralista, en la que trató de ajustar la teoría sintética de la evolución a los nuevos conocimientos de labiología molecular. Kimura cree que la mayor parte de las mutaciones no son beneficiosas ni perjudiciales, son neutras. Por tanto, la selección natural no influye sobre las mutaciones.
Aunque no niega la importancia de la selección natural en la evolución adaptativa, cree que es más importante la deriva genética de los mutantes. Es decir, el que haya más o menos alelos en una población depende del azar, en forma de deriva genética, no de la presión selectiva.
La teoría neutralista habla de un nivel molecular, ya que a nivel macroscópico sigue afirmando que la selección natural es el motor evolutivo.
Según algunos paleontólogos, como Stephen Jay Gould, creen que es más acertada la teoría del equilibrio puntuado o intermitente (1972). Según esta teoría, las especies están mucho tiempo sin ningún cambio o con cambios poco importantes (periodos de tiempo llamados estasis), pero en determinados momentos, algunas especies tienen periodos de cambio muy rápido.
No hay que confundir el puntualismo con el saltacionismo. El saltacionismopostula que aparecen nuevas especies en una sola generación, y el puntualismo no está a favor de eso.
El puntualismo no niega el neodarwinismo, sino que propone una explicación para los casos en los que se produce una rápida diversificación de especies.
Por ejemplo, en el Cámbrico hubo una gran diversificación de especies que no se podría explicar con el gradualismo del neodarwinismo.
Teoría neutralista o neutralismo.
El biólogo japonés Motoo Kimura, en 1968 propuso la teoría neutralista, en la que trató de ajustar la teoría sintética de la evolución a los nuevos conocimientos de labiología molecular. Kimura cree que la mayor parte de las mutaciones no son beneficiosas ni perjudiciales, son neutras. Por tanto, la selección natural no influye sobre las mutaciones.
Aunque no niega la importancia de la selección natural en la evolución adaptativa, cree que es más importante la deriva genética de los mutantes. Es decir, el que haya más o menos alelos en una población depende del azar, en forma de deriva genética, no de la presión selectiva.
La teoría neutralista habla de un nivel molecular, ya que a nivel macroscópico sigue afirmando que la selección natural es el motor evolutivo.
viernes, 9 de febrero de 2018
Herencia no mendeliana
Herencia intermedia
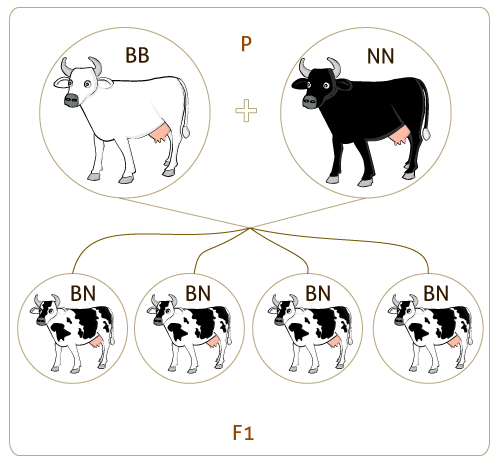
Experimentos con flores de camelia, dieron resultados diferentes a los obtenidos por Mendel. Al cruzar una planta de línea pura, que produce flores rojas, con una planta de línea pura que produce flores blancas, se obtiene en la primera generación plantas con flores rosadas, es decir, un rasgo intermedio al de los dos progenitores puros. Cuando las plantas de flores rosadas se cruzan entre sí, la F2 resultante produce 25% de plantas de flores rojas, 50% de flores rosadas y 25% de flores blancas, con lo que se obtiene una proporción del color de las flores o fenotípica de 1:2:1.
Estos resultados ocurren si uno de los alelos para el color de la flor ejerce una dominancia incompleta sobre el otro alelo. Otros rasgos con herencia incompleta son: braquidactilia y anemia falciforme.
Genes ligados
Los genes se separan independientemente durante la meiosis; sin embargo, existen grupos de genes en un mismo cromosoma. Un ejemplo de ligamiento lo constituyen los genes del grupo sanguíneo Rh y los genes HLA (Antígeno Leucocitario Humano).
En el chícharo dulce, el color de flor púrpura (P) domina sobre el rojo (p), y la forma larga de polen (L) domina sobre la redonda (l). Cuando un chícharo homocigoto de polen largo y de flor púrpura se cruza con uno de polen redondo y de flor roja, toda la F1 tiene flores púrpuras y polen largo.
Así los fenotipos de la F2 no se presentan como 9:3:3:1, sino que tienen 75% de plantas de polen largo y flor púrpura y 25% de polen redondo y flor roja. Sin embargo, los genes para el color de la flor y la forma del polen están en el mismo cromosoma de tal manera que los genes se distribuyen juntos durante la meiosis y se heredan juntos.
Herencia ligada al sexo
Existen rasgos determinados por genes que se encuentran en cualquiera de los dos cromosomas sexuales: X o Y. Por esta razón, las proporciones que se obtienen en la descendencia, así como los mecanismos por los cuales se heredan, cambian respecto a los genes que se encuentran en los cromosomas somáticos.
Genes ligados
Los genes se separan independientemente durante la meiosis; sin embargo, existen grupos de genes en un mismo cromosoma. Un ejemplo de ligamiento lo constituyen los genes del grupo sanguíneo Rh y los genes HLA (Antígeno Leucocitario Humano).
En el chícharo dulce, el color de flor púrpura (P) domina sobre el rojo (p), y la forma larga de polen (L) domina sobre la redonda (l). Cuando un chícharo homocigoto de polen largo y de flor púrpura se cruza con uno de polen redondo y de flor roja, toda la F1 tiene flores púrpuras y polen largo.
Así los fenotipos de la F2 no se presentan como 9:3:3:1, sino que tienen 75% de plantas de polen largo y flor púrpura y 25% de polen redondo y flor roja. Sin embargo, los genes para el color de la flor y la forma del polen están en el mismo cromosoma de tal manera que los genes se distribuyen juntos durante la meiosis y se heredan juntos.
Herencia ligada al sexo
Existen rasgos determinados por genes que se encuentran en cualquiera de los dos cromosomas sexuales: X o Y. Por esta razón, las proporciones que se obtienen en la descendencia, así como los mecanismos por los cuales se heredan, cambian respecto a los genes que se encuentran en los cromosomas somáticos.
jueves, 8 de febrero de 2018
Herencia Mendeliana
Herencia autosómica dominante
Es aquella donde sólo se necesita uno de los genes para que se exprese una mutación Si una persona tiene un alelo dominante defectuoso desarrollará la enfermedad. Se conoce como autosómica porque el gen se encuentra en un cromosoma somático o autosoma. La anomalía será más extrema o severa en los individuos homocigotos que en los heterocigotos. Puede llegar a ser letal. Por lo general, las enfermedades genéticas graves no son frecuentes, puesto que los productos se abortan o mueren en la infancia. Se heredan de modo autosómico dominante: braquidactilia, enanismo acondroplásico, enfermedad de Hutington, polidactilia y aniridia.
Herencia autosómica recesiva
Este tipo de herencia se expresa únicamente cuando en el genotipo de un individuo hay dos genes alelos recesivos que pueden ser normales o dañados (mutados). Casi todas las enfermedades causadas por la falta de una enzima esencial, se heredan como recesivas. Generalmente los portadores son heterocigotos para el gen puesto que llevan un alelo normal y otro alterado. Son personas fenotípicamente normales pero que pueden transmitir su alelo defectuoso a sus hijos.
El riesgo de presentar una enfermedad heredada de esta forma aumenta con la consaguinidad, pero puede suceder que individuos sin ningún parentesco entre sí tengan el mismo gen (alelo) defectuoso, por lo que tendrán un 25% de probabilidades de tener un hijo (homocigoto) afectado.
Se heredan de forma autosómica recesiva la anemia drepanocítica, albinismo, fenilcetonuria y fibrosis quística, entre otras.
miércoles, 7 de febrero de 2018
Equilibrio puntuado
La selección natural es el mecanismo evolutivo más comúnmente aceptado por la comunidad científica, aunque se han formulado varias teorías sobre otros posibles motores evolutivos. Aunque minoritarias, estas propuestas siguen alimentando un interesante debate dentro de la biología evolutiva, y posiblemente permitan alcanzar si no el «nuevo paradigma» que algunos vaticinan, sí una reformulación de la teoría sintética de la evolución que la dote de un mayor poder explicativo.
Y es que estas nuevas propuestas no suponen el desmantelamiento de la teoría evolutiva, como parecen creer en algunos medios, todo lo contrario, se trata de nuevos puntos de vista sobre algunos aspectos de ésta que pueden contribuir a su mejora, más que a su invalidación. En algunos casos, ciertamente, modifican el proceso mutación->selección->fijación/desaparición, pero en otros, solo cambian el ritmo o complementan a la mutación como fuente de variación, poniéndose incluso por encima de ella en importancia. Sin embargo, independientemente del proceso que produzca el nuevo carácter (o en algunos casos, incluso, la nueva especie), argumentaremos en este artículo y siguientes como la selección natural sigue actuando irremediablemente sobre el resultado.
El Equilibrio Puntuado de Gould y EldredgeEn 1972, los paleontólogos Niles Eldredge y Stephen Jay Gould formularon la teoría del Equilibrio Puntuado (Punctuated Equilbrium), aunque quizá la traducción literal del término no es la más adecuada, y sería más correcto emplear “Equilibrio Intermitente”; no obstante, utilizaremos la primera forma, dado que es la más empleada en castellano.
Básicamente, Gould y Eldredge afirman que el proceso evolutivo no consiste en el cambio gradual contínuo que postula el neodarwinismo. Por el contrario, el Equilibrio Puntuado explica que las especies se mantienen en un estado de estasis, con nulos o mínimos cambios durante largos períodos de tiempo, para sufrir en determinados momentos una «explosión evolutiva» durante la que se producen grandes cambios en cortos periodos de tiempo. Además, estos cambios no producirían una especiación «lineal» como propone la teoría sintética, sino un tipo de «evolución en mosaico» o ramificada donde los rápidos cambios morfológicos originarían varias especies distintas partiendo de la forma original.
La teoría del Equilibrio Puntuado no debe confundirse con el Saltacionismo, hipótesis según la cual un gran cambio producido por macromutación puede originar una nueva especie en una única generación. El Saltacionismo está prácticamente abandonado como hipótesis evolutiva, salvo en algunos casos particulares como la poliploidía en los vegetales.
Según la teoría del Equilibrio Puntuado, una especie permanecería invariable durante la inmensa mayoría de su existencia, incluso aunque el hábitat cambie. Para explicar este fenómeno, Eldredge (1995) introduce el concepto de «seguimiento del hábitat» («habitat tracking»): ante un cambio ambiental, la especie persigue su hábitat original en lugar de adaptarse a nuevas condiciones mediante selección natural.
La especiación se produciría por el aislamiento reproductivo de una pequeña sub-población, cuyo limitado tamaño produce una relativa inestabilidad evolutiva, anulando las condiciones que mantienen la estasis y sufriendo una tasa evolutiva muy rápida durante el tiempo necesario para que se restablezcan estas condiciones de estasis. Esto produciría una radiación evolutiva a partir de la pequeña población que originará multitud de formas nuevas, mientras el «grueso» de la especie se mantiene estática hasta su extinción. De esta forma, el Equilibrio Puntuado entiende la especiación como un caso especial de especiación alopática, con un período que puede ser tan corto, geológicamente hablando, como 5.000 a 50.000 años (Eldredge, 1995) hasta cientos de miles o pocos millones de años (Gould, 1995).
Así pues, las modificaciones que propone el Equilibro Puntuado a la Teoría Sintética afectan fundamentalmente a dos aspectos: por un lado el ritmo evolutivo, frente al gradualismo contínuo, el EP propone largos períodos de estasis y cortos períodos de explosión evolutiva) y por otro el modo de especiación, donde en lugar de la especiación lineal o filogenética, se postula una especiación ramificada que origina numerosas especies diferentes en un corto espacio de tiempo.
¿Que dice el registro fósil? El registro fósil muestra muy a menudo que las especies permanecen estables durante mucho tiempo, desapareciendo después bruscamente. En muchas ocasiones, también muestra radiaciones evolutivas donde un elevado número de especies surgen repentinamente y prácticamente sin registro de formas intermedias anteriores.
Estas peculiaridades han sido justificadas por el gradualismo, desde el propio Darwin, alegando que el registro fósil es muy incompleto y, por lo tanto, la poca representación de formas intermedias no invalidaría la teoría. Sin embargo, el Equilibrio Puntuado predice exactamente el tipo de registro fósil observado (Ridley 1993), por lo que éste constituiría una representación fidedigna del proceso evolutivo, más que una muestra incompleta de lo que realmente ocurrió (Gould, 1980).
Equilibrio Puntuado vs. Teoría SintéticaDurante cierto período (1977-1982), Eldredge y Gould adoptaron una postura más radical de la teoría, lo que ha venido a llamarse «la versión fuerte» (Hoffman, 1992) en la que la especiación resultaría ser un fenómeno evolutivo causado por un proceso macroevolutivo propio, irreductible a los procesos de cambio microevolutivo que operan dentro del marco del medio ambiente y la constitución biológicade una especie. En esos momentos, el Equilibrio Puntuado se presentaba como una alternativa a la Teoría Sintética.
Pero en realidad, ambas teorías no resultan incompatibles. Tanto los procesos de especiación explosiva y ramificada propios del EP, como los cambios graduales y lentos pueden estar dándose simultáneamente en la historia evolutiva de la vida. Aunque en menor cantidad, también existen pruebas fósiles de formas intermedias que parecen obedecer a la evolución lineal propia del gradualismo neodarwinista.
Por otro lado, la especiación del Equilibrio Puntuado no excluye la Selección Natural. Por rápida y diversa que resulte la especiación, las nuevas formas se verán sometidas a la competencia por los recursos, tanto intra como interespecíficamente, moldeando el mapa final mediante la selección de las adaptaciones más exitosas. De hecho, Gould (1980) señala que no pretende definir el cambio puntuacional como único mecanismo, sino como otra alternativa al cambio evolutivo, dado que el gradualismo funciona bien en ocasiones.
Dawkins (1986) opina que el Equilibrio Puntuado no representa una nueva teoría, sino una modificación al concepto neodarwinista debido a la variación de la tasa de evolución, constituyendo de esta forma una complementación al darwinismo.
Otros autores (Chacón y Barahona, 2002) llegan a sugerir que el Equilibrio puntuado es en la actualidad una teoría de rango medio, en el sentido de Merton (1968): una teoría a caballo entre las hipótesis de trabajo y las teorías generales (en este caso la Teoría Sintética), al ocuparse únicamente de ciertos aspectos parciales del proceso evolutivo. Según estos autores, la Teoría Sintética habría absorbido la mayor parte de los postulados del Equilibrio Puntuado.
A pesar de que en estas posturas conciliadoras quizá no se atribuya toda la importancia que tiene el establecimiento por parte del EP de la estasis como condición normal en la evolución de las especies (Broyles, 1997) y a la «versión fuerte» de la teoría, realmente no existe contradicción propiamente dicha entre las tesis centrales de la Teoría Sintética y el Equilibrio Puntuado. Sin abandonar la existencia de procesos graduales de especiación en ciertos casos, el EP aporta una explicación a los largos períodos sin apenas cambios y a las radiaciones evolutivas observadas en el registro fósil, manteniendo la fuentes de variación -mutaciones- y el mecanismo selectivo -selección natural- como pilares del cambio evolutivo.
Y es que estas nuevas propuestas no suponen el desmantelamiento de la teoría evolutiva, como parecen creer en algunos medios, todo lo contrario, se trata de nuevos puntos de vista sobre algunos aspectos de ésta que pueden contribuir a su mejora, más que a su invalidación. En algunos casos, ciertamente, modifican el proceso mutación->selección->fijación/desaparición, pero en otros, solo cambian el ritmo o complementan a la mutación como fuente de variación, poniéndose incluso por encima de ella en importancia. Sin embargo, independientemente del proceso que produzca el nuevo carácter (o en algunos casos, incluso, la nueva especie), argumentaremos en este artículo y siguientes como la selección natural sigue actuando irremediablemente sobre el resultado.
El Equilibrio Puntuado de Gould y EldredgeEn 1972, los paleontólogos Niles Eldredge y Stephen Jay Gould formularon la teoría del Equilibrio Puntuado (Punctuated Equilbrium), aunque quizá la traducción literal del término no es la más adecuada, y sería más correcto emplear “Equilibrio Intermitente”; no obstante, utilizaremos la primera forma, dado que es la más empleada en castellano.
Básicamente, Gould y Eldredge afirman que el proceso evolutivo no consiste en el cambio gradual contínuo que postula el neodarwinismo. Por el contrario, el Equilibrio Puntuado explica que las especies se mantienen en un estado de estasis, con nulos o mínimos cambios durante largos períodos de tiempo, para sufrir en determinados momentos una «explosión evolutiva» durante la que se producen grandes cambios en cortos periodos de tiempo. Además, estos cambios no producirían una especiación «lineal» como propone la teoría sintética, sino un tipo de «evolución en mosaico» o ramificada donde los rápidos cambios morfológicos originarían varias especies distintas partiendo de la forma original.
La teoría del Equilibrio Puntuado no debe confundirse con el Saltacionismo, hipótesis según la cual un gran cambio producido por macromutación puede originar una nueva especie en una única generación. El Saltacionismo está prácticamente abandonado como hipótesis evolutiva, salvo en algunos casos particulares como la poliploidía en los vegetales.
Según la teoría del Equilibrio Puntuado, una especie permanecería invariable durante la inmensa mayoría de su existencia, incluso aunque el hábitat cambie. Para explicar este fenómeno, Eldredge (1995) introduce el concepto de «seguimiento del hábitat» («habitat tracking»): ante un cambio ambiental, la especie persigue su hábitat original en lugar de adaptarse a nuevas condiciones mediante selección natural.
La especiación se produciría por el aislamiento reproductivo de una pequeña sub-población, cuyo limitado tamaño produce una relativa inestabilidad evolutiva, anulando las condiciones que mantienen la estasis y sufriendo una tasa evolutiva muy rápida durante el tiempo necesario para que se restablezcan estas condiciones de estasis. Esto produciría una radiación evolutiva a partir de la pequeña población que originará multitud de formas nuevas, mientras el «grueso» de la especie se mantiene estática hasta su extinción. De esta forma, el Equilibrio Puntuado entiende la especiación como un caso especial de especiación alopática, con un período que puede ser tan corto, geológicamente hablando, como 5.000 a 50.000 años (Eldredge, 1995) hasta cientos de miles o pocos millones de años (Gould, 1995).
Así pues, las modificaciones que propone el Equilibro Puntuado a la Teoría Sintética afectan fundamentalmente a dos aspectos: por un lado el ritmo evolutivo, frente al gradualismo contínuo, el EP propone largos períodos de estasis y cortos períodos de explosión evolutiva) y por otro el modo de especiación, donde en lugar de la especiación lineal o filogenética, se postula una especiación ramificada que origina numerosas especies diferentes en un corto espacio de tiempo.
¿Que dice el registro fósil? El registro fósil muestra muy a menudo que las especies permanecen estables durante mucho tiempo, desapareciendo después bruscamente. En muchas ocasiones, también muestra radiaciones evolutivas donde un elevado número de especies surgen repentinamente y prácticamente sin registro de formas intermedias anteriores.
Estas peculiaridades han sido justificadas por el gradualismo, desde el propio Darwin, alegando que el registro fósil es muy incompleto y, por lo tanto, la poca representación de formas intermedias no invalidaría la teoría. Sin embargo, el Equilibrio Puntuado predice exactamente el tipo de registro fósil observado (Ridley 1993), por lo que éste constituiría una representación fidedigna del proceso evolutivo, más que una muestra incompleta de lo que realmente ocurrió (Gould, 1980).
Equilibrio Puntuado vs. Teoría SintéticaDurante cierto período (1977-1982), Eldredge y Gould adoptaron una postura más radical de la teoría, lo que ha venido a llamarse «la versión fuerte» (Hoffman, 1992) en la que la especiación resultaría ser un fenómeno evolutivo causado por un proceso macroevolutivo propio, irreductible a los procesos de cambio microevolutivo que operan dentro del marco del medio ambiente y la constitución biológicade una especie. En esos momentos, el Equilibrio Puntuado se presentaba como una alternativa a la Teoría Sintética.
Pero en realidad, ambas teorías no resultan incompatibles. Tanto los procesos de especiación explosiva y ramificada propios del EP, como los cambios graduales y lentos pueden estar dándose simultáneamente en la historia evolutiva de la vida. Aunque en menor cantidad, también existen pruebas fósiles de formas intermedias que parecen obedecer a la evolución lineal propia del gradualismo neodarwinista.
Por otro lado, la especiación del Equilibrio Puntuado no excluye la Selección Natural. Por rápida y diversa que resulte la especiación, las nuevas formas se verán sometidas a la competencia por los recursos, tanto intra como interespecíficamente, moldeando el mapa final mediante la selección de las adaptaciones más exitosas. De hecho, Gould (1980) señala que no pretende definir el cambio puntuacional como único mecanismo, sino como otra alternativa al cambio evolutivo, dado que el gradualismo funciona bien en ocasiones.
Dawkins (1986) opina que el Equilibrio Puntuado no representa una nueva teoría, sino una modificación al concepto neodarwinista debido a la variación de la tasa de evolución, constituyendo de esta forma una complementación al darwinismo.
Otros autores (Chacón y Barahona, 2002) llegan a sugerir que el Equilibrio puntuado es en la actualidad una teoría de rango medio, en el sentido de Merton (1968): una teoría a caballo entre las hipótesis de trabajo y las teorías generales (en este caso la Teoría Sintética), al ocuparse únicamente de ciertos aspectos parciales del proceso evolutivo. Según estos autores, la Teoría Sintética habría absorbido la mayor parte de los postulados del Equilibrio Puntuado.
A pesar de que en estas posturas conciliadoras quizá no se atribuya toda la importancia que tiene el establecimiento por parte del EP de la estasis como condición normal en la evolución de las especies (Broyles, 1997) y a la «versión fuerte» de la teoría, realmente no existe contradicción propiamente dicha entre las tesis centrales de la Teoría Sintética y el Equilibrio Puntuado. Sin abandonar la existencia de procesos graduales de especiación en ciertos casos, el EP aporta una explicación a los largos períodos sin apenas cambios y a las radiaciones evolutivas observadas en el registro fósil, manteniendo la fuentes de variación -mutaciones- y el mecanismo selectivo -selección natural- como pilares del cambio evolutivo.
Suscribirse a:
Entradas (Atom)